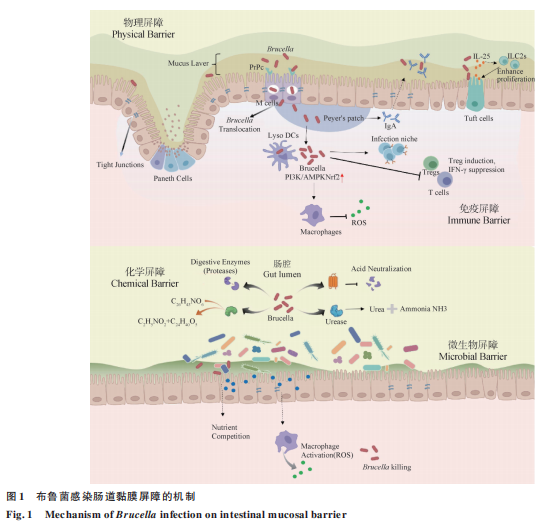
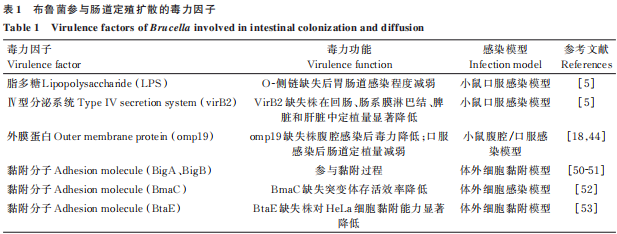
《畜牧兽医学报》2026年第57卷第10期刊登了中国农业科学院兰州兽医研究所兰州大学动物医学与生物安全学院动物疫病防控全国重点实验室等单位冉维,褚鑫龙,马轲,储岳峰的文章——“布鲁菌感染肠道黏膜屏障机制的研究进展”,该文由甘肃省科技计划资助项目(26JRRA239);甘肃省科技重大专项课题(22ZD6NA001);中国农业科学院创新工程项目(CAASCSAB-202403)资助。该综述的亮点:本文聚焦布鲁菌"非典型肠道病原"这一争议命题,系统刻画其与肠道物理、化学、免疫、微生物四重屏障的相互作用——既揭示病原经PrPc/M细胞跨上皮、CGH降解胆汁盐与脲酶中和胃酸破化学屏障、借"特洛伊木马"劫持树突状细胞并利用PI3K/AMPK/Nrf2、cAMP/PKA等通路营造"低反应性炎症稳态"的入侵逃逸策略,又梳理LPS-O侧链、T4SS、omp19等黏附与定殖毒力因子,明确了布鲁菌突破完整肠屏障、由肠腔跨越至黏膜下这一长期不清的核心科学问题,为阐释布病消化道感染分子机制及开发黏膜免疫防控新靶点提供了理论框架。 导读 布鲁菌属(Brucella)是一类微小、胞内寄生的革兰阴性菌,其引起的布鲁菌病(布病)是高度流行的人畜共患传染病,可致人和动物生殖功能障碍,严重危害人类健康并给畜牧业造成巨大损失。2023年建模统计显示全球170多个国家报道过布病、人年发病约210万;我国动物布病疫情2006—2021年持续加重,超98%病例发生在绵羊和牛,近年随畜产品贸易增加呈"北高南扩"态势。消化道是布鲁菌主要传播途径之一,但传统上并不把它看作肠道病原菌(与沙门菌不同,布鲁菌不在淋巴系统增殖、临床上无肠道损伤),其经消化道传播仍存争议。然而实验证实布鲁菌16M株感染3~7 d即可在肠系膜淋巴结、脾、肝定植并能在肠道组织存留至少21 d,低剂量口服感染也可在派尔集合淋巴结和肠系膜淋巴结早期定植、长期存在。鉴于布鲁菌如何突破结构完整的肠道屏障、从肠腔跨越至黏膜下的机制仍不清楚,本文重点综述布鲁菌与肠道物理、化学、免疫及微生物屏障的相互作用,并梳理可能参与肠道感染的毒力因子,为阐明其消化道感染分子机制、制定布病防控策略提供理论依据。 1.1 布鲁菌与肠道物理屏障 物理屏障由肠上皮细胞、细胞间紧密连接及分泌黏液层构成。结肠双层黏液内层孔隙极小(<0.5 μm)可有效阻挡病原接触上皮;小肠黏液虽孔隙较大,但流动更新与平滑肌蠕动可清除、排出大部分病原,加之潘氏细胞分泌的β-防御素、溶菌素形成抗菌梯度,共同阻滞入侵。但布鲁菌感染后宿主转录组发生波动,紧密连接与三叶因子介导的黏膜修复两条通路受抑,提示其很可能破坏肠道屏障并促跨上皮迁移。跨上皮机制上,布鲁菌感染HeLa等上皮细胞时进入部位伴膜变化与局部F-肌动蛋白募集,在细胞表面形成微菌落、局灶性黏附,靶点可能为唾液酸残基与硫酸化糖基,并可剂量依赖结合纤连蛋白、玻连蛋白等细胞外基质。对肠上皮而言,布鲁菌可被肠微皱褶M细胞经其顶端高度表达的朊病毒蛋白(PrPc)受体选择性内化,穿越上皮进入派尔结再扩散全身;最新研究从Hsp60鉴定出PrPc结合肽PEP1可作M细胞靶向配体。但PrPc沉默的小胶质细胞仍可被入侵,提示尚存在其他受体或入侵途径。 1.2 布鲁菌与肠道化学屏障 化学屏障含胆汁盐、消化酶、抗菌肽等。几乎所有布鲁菌都含胆碱甘氨酸水解酶(CGH,一种胆汁盐水解酶),可在体外分解甘氨胆酸;CGH缺失株在胆汁条件下受损严重,腹腔或口服感染后脾脏载菌量下降。布鲁菌还含脲酶系统(Ure1/Ure2)水解尿素产氨中和胃酸,故脲酶与CGH共同作用足以部分突破上消化道化学屏障。此外外膜蛋白omp19可助其逃避宿主蛋白水解杀伤,重组无脂蛋白U-omp19亦能抑制肠刷状缘膜蛋白酶与上皮半胱氨酸蛋白酶、保护共递送抗原不被降解,既保障自身肠道存活,也为突破化学屏障奠定基础。 1.3 布鲁菌与肠道免疫屏障 免疫屏障主要由肠相关淋巴组织(GALT)构成,含派尔结、固有层散在淋巴细胞及上皮内淋巴细胞等多种抗原递呈细胞。派尔结表达溶菌酶的树突状细胞(LysoDC)既可直捕跨细胞转运的病原菌、又可摄取M细胞来源的病原菌,且高表达MHC-Ⅱ与共刺激分子、抗原呈递能力强;固有层分泌的IgA可分泌入肠腔中和病原;第3组先天淋巴样细胞(ILC3)含量高,既抗病原又维护屏障完整;小肠杯状细胞亦可将肠腔抗原递给固有层耐受原性CD103⁺DC亚群。布鲁菌则进化出逃逸与利用策略:一是借抗原递呈细胞作"特洛伊木马",更易感染树突状细胞并在其中大量繁殖、借其侵入淋巴系统散播,并可诱导B细胞形成免疫调节亚群提供感染生态位建立慢性感染;二是抑制适应性免疫,感染DC后抑其成熟、抗原呈递及IL-12分泌,并诱导调节性T细胞增多、抑T增殖与IFN-γ产生;三是先天免疫层面,激活PI3K/AMPK/Nrf2上调血红素加氧酶-1直接抑巨噬细胞ROS与促炎因子,借YejABEF ABC转运系统抵抗抗菌肽并适应胞内酸性环境,经EGFR-ERK轴下调MHC-Ⅰ干扰CD8⁺T识别、抑AIM2炎症小体营造"低反应性炎症稳态",并经cAMP/PKA诱导CREB磷酸化竞争性抑STAT1-CBP/p300复合物形成以特异性抑制IFN-γ下游基因、使巨噬细胞"脱敏"。此外布鲁菌感染刺激簇细胞增多并分泌IL-25激活ILC2,形成簇细胞-ILC2回路,将经典抗寄生虫回路拓展至抗细菌先天免疫。 1.4 布鲁菌与肠道微生物屏障 共生菌黏附成膜占据生态位、争夺营养并释放抗菌素、过氧化氢等,阻止有害菌黏附定植入侵;其产生的短链脂肪酸(SCFA)可直接调控病原毒力基因表达,如丁酸抑HDAC3激活巨噬细胞产ROS增强杀菌(但SCFA与布鲁菌肠道感染的直接研究尚缺)。微生物组成改变可增宿主对布鲁菌的易感性:肠上皮先天免疫受体NLRP6缺失后小鼠菌群多样性降低、致病菌扩张,感染布鲁菌后肠道菌量显著多于野生型;经口感染布鲁菌后小鼠肠道菌群与相关基因表达亦发生波动,均证明微生物屏障在布鲁菌入侵中作用重要(布鲁菌感染肠黏膜屏障机制见图1)。 布鲁菌肠道感染机制研究有限,多数毒力因子具体作用不明,本文梳理几类潜在参与肠道感染的因子(汇总见表1)。 2.1 脂多糖(LPS) 按结构分光滑型(有完整O-侧链)与粗糙型(缺O-侧链),光滑型更利于入侵、全菌致病性高于单独LPS;口服感染中缺失O-侧链后胃肠道感染减弱,提示O-侧链既维持光滑表型,又可能助布鲁菌突破肠屏障建立感染,其机制仍待研究。 2.2 Ⅳ型分泌系统(T4SS) 虽多研究其胞内存活复制作用,但VirB2缺失株在小鼠回肠、肠系膜淋巴结、脾、肝定植量均显著降低,提示T4SS可能参与穿越肠屏障或抵抗局部免疫的早期过程,其余T4SS因子在肠黏膜入侵中的作用尚缺广泛研究。 2.3 外膜蛋白(OMP) 布鲁菌主要免疫抗原,可直接接触免疫环境。omp19与肠道感染密切相关,omp10/omp19缺失株腹腔感染时脾、血感染变轻、毒力显著降低,omp19缺失株口服感染后肠道定植量显著减弱;U-omp19是可抑胰蛋白酶、糜蛋白酶、弹性蛋白酶而不引起肠道免疫应答的蛋白酶抑制剂,被用作黏膜佐剂助增肠上皮抗原递送,以益生菌干酪乳酪杆菌表达omp19经口免疫可诱导小鼠高水平抗体。omp25或参与附着侵入、可抑Toll样受体介导的促炎因子降低免疫反应;omp31有利入侵巨噬细胞复制生态位、助慢性感染,其在肠道特定环境中的作用待解析。 2.4 黏附分子 黏附上皮是成功感染的首要条件,已鉴定多个关键分子。BigA、BigB均可介导与上皮细胞黏附,BigA促布鲁菌靶向细胞-细胞连接膜;自转运蛋白BmaC借纤连蛋白介导猪布鲁菌与上皮结合,缺失后存活效率降低;BtaE缺失株对HeLa上皮黏附能力显著降低。这些黏附分子各司其职、共构成宿主侵入分子基础,因肠上皮与其他上皮高度同源,其在肠道感染中的具体机制值得未来系统阐明。 布病是重要人兽共患病,消化道感染主要来自食用未巴氏灭菌奶制品、牧区尤重,但布鲁菌如何突破屏障完成初始感染尤其经肠黏膜入侵的分子机制尚不清晰。既往表明布鲁菌经肠道感染后不仅建立系统性感染,还直接引起肠道微生态与病理生理改变(菌群失调、肠上皮黏膜屏障受损、局部炎症),说明其可直接破坏肠道结构;现有证据显示布鲁菌可能利用黏膜相关淋巴组织中特化的M细胞作通道穿越肠上皮、被黏膜下免疫细胞捕获全身扩散,但M细胞是否具有唯一性、肠道其他细胞是否参与仍待阐明。本文梳理了布鲁菌破坏肠黏膜屏障入侵机制的研究进展并归纳与肠道定殖、黏附、入侵相关的毒力因子。鉴于全球布病发病率回升,深入解析感染机制尤为迫切,期望借本综述明确核心科学问题与研究进展,为揭示布鲁菌肠道黏膜感染机制提供理论参考与研究思路,进而为布病防控提供新科学依据与作用靶点。 关键词:布鲁菌;肠道黏膜屏障;入侵感染;研究进展 引用本文 冉维, 褚鑫龙, 马轲, 储岳峰. RAN Wei, CHU Xinlong, MA Ke, CHU Yuefeng. 
前言
1 布鲁菌与肠道屏障
2 布鲁菌参与肠道定殖扩散的毒力因子
3 问题与展望
 返回列表